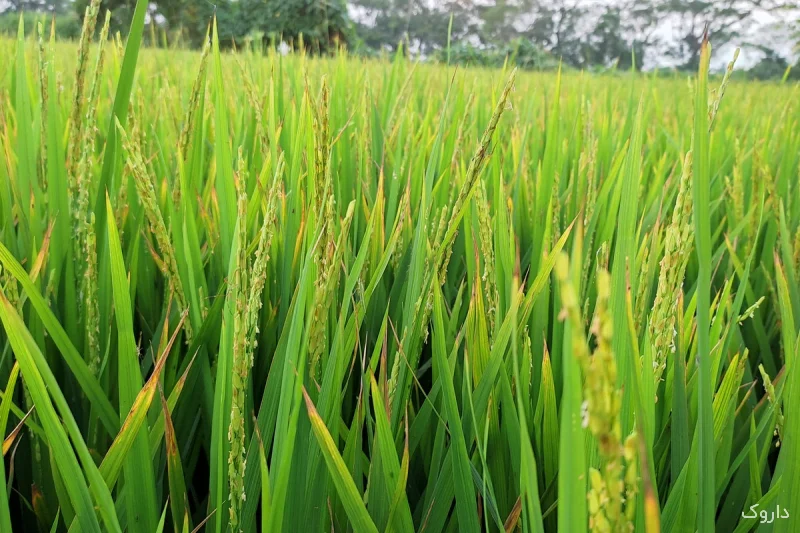
ردههای برنج تراریختهای که برای تولید یک آنتیژن واکسن علیه ویروس بیماری نیوکاسل مهندسی شدهاند، بر پایه مطالعهای منتشرشده در مجله Animal Diseases، ثبات ژنتیکی و زیستشیمیایی خود را در سه نسل پیاپی و در شرایط مزرعهای محصور حفظ کردهاند. این پژوهش را گروهی شامل لی ژانگ، هونگیان چو و نویسنده ارشد، گایپینگ ژانگ، انجام دادهاند و دو رده مستقل برنج با نامهای HN-1 و HN-2 را بررسی کرده است که شکل دیمری پروتئین هماگلوتینین-نورآمینیداز (HN) ویروس را در آندوسپرم، یعنی بافت نشاستهای که بخش عمده دانه را میسازد، بیان میکنند.
بیماری نیوکاسل یک بیماری ویروسی حاد و بسیار مسری طیور است که پیامدهای اقتصادی قابلتوجهی در سراسر جهان دارد. سازمان جهانی بهداشت حیوانات (WOAH) آن را در فهرست بیماریهای قابلگزارش قرار داده و چین آن را بیماری دامی رده یک طبقهبندی میکند، که نشاندهنده تهدید آن برای سلامت طیور و تجارت است. ویروس دو گلیکوپروتئین سطحی کلیدی دارد که یکی از آنها، یعنی HN، در شناسایی گیرنده و ورود ویروس نقش محوری دارد. از آنجا که سویههای ژنوتیپ VII اکنون گستردهاند، HN به آنتیژن هدف ترجیحی برای واکسنهایی تبدیل شده که با ویروسهای در گردش همخوان طراحی میشوند.
واکسنهای تجاری موجود نیوکاسل شامل فرمولاسیونهای غیرفعال، زنده تخفیفحدتیافته و ناقل ویروسیاند. نویسندگان یادآور میشوند که با توجه به تنوع ژنتیکی و تکامل مداوم ویروس، این واکسنهای سنتی اغلب در برابر سویههای ژنوتیپ VII محافظت متقاطعی کمتر از ۳۰ درصد ایجاد میکنند. همچنین به زنجیره سرما و ایمنسازیهای مکرر نیاز دارند که هزینهها را بالا میبرد و استقرار در مقیاس بزرگ، بهویژه در مناطق کممنابع، را دشوار میکند. هنوز هیچ واکسن زیرواحدی دامپزشکی مشتق از گیاه علیه بیماری نیوکاسل بهصورت تجاری عرضه نشده است و پژوهشگران این را بخشی از انگیزه خود برای توسعه سکوهای تولید ارزان و پایدار در برابر گرما میدانند.
آندوسپرم برنج بهدلیل هزینه تولید پایین، زیستتوده بالا، نظام تراریختسازی جاافتاده و امکان نگهداری آنتیژن در دمای اتاق بدون زنجیره سرما، بهعنوان بیوراکتور برای آنتیژنهای واکسن دامپزشکی توجه جلب کرده است. آنتیژنهای حاصل از دانه را میتوان در اصل مستقیماً با خوراک طیور مخلوط کرد تا ایمنسازی خوراکی انجام شود و استرس تزریق و نیروی کار در مزارع بزرگ کاهش یابد. مطالعه اثباتمفهومی پیشین Ma و همکاران یک آنتیژن HN دیمری سر-به-دم ساخته و نشان داده بود که پروتئین HN دیمری بیانشده در برنج میتواند محافظت بالینی کامل در برابر چالش ویروسی در مرغها ایجاد کند. اما آن کار به ثبات ژنتیکی چندنسلی، عملکرد زراعی برای کشت در مقیاس بزرگ و ایمنی زیستی محیطی مزرعهای، یعنی سه پیششرطی که مطالعه جدید به بررسی آنها پرداخته، نپرداخته بود.
برای ارزیابی ثبات ژنتیکی، گروه پژوهش گیاهان نسلهای T1، T2 و T3 هر دو رده را توالییابی کل ژنوم کرد. خوانشهای توالییابی با نرخ ۹۶٫۲۲ تا ۹۹٫۷۸ درصد روی ژنوم مرجع برنج نگاشت شدند؛ پوشش ژنوم مرجع ۹۸٫۳۱ تا ۹۸٫۳۸ درصد و میانگین عمق توالییابی ۲۵٫۵ تا ۳۹٫۳ برابر بود. تحلیل محل درج، یک جابهجایی بینکروموزومی ثابت را در هر سه نسل نشان داد: قطعهای از کروموزوم ۱ در موقعیتهای ۳۲٬۶۸۰٬۵۰۳ تا ۳۲٬۶۸۱٬۷۴۳ جفتباز به کروموزوم ۳ منتقل شده بود؛ مرز بالایی در اینترون یک ژن روی کروموزوم ۱ و مرز پایینی در ناحیه بینژنی روی کروموزوم ۳ قرار داشت. تحلیل واریانتها در خوانشهای هدف، هیچ تغییر توالیای را در ناحیه کدکننده ژن HN در هیچیک از نسلها نشان نداد.
تحلیل بیان نیز تصویر ثبات را تقویت کرد. واکنش زنجیرهای پلیمراز (PCR) حضور ژن HN را در DNA ژنومی خوشهها و برگهای گیاهان تراریخته در هر سه نسل تأیید کرد، در حالی که در شاهد وحشی TP309 (رقم جاپونیکای تایپه ۳۰۹ که ردهها در آن تولید شدهاند) باندی دیده نشد. RT-PCR کمّی رونوشتهای HN را در بافت برگ هر دو رده در هر نسل، با سطحی حدود ۸ تا ۴۰۰ برابر شاهدهای وحشی شناسایی کرد، هرچند نویسندگان این دامنه گسترده را به تغییرپذیری بین گیاهان و اثرات موقعیتی درج ترانسژن نسبت میدهند، نه روندی وابسته به نسل. وسترن بلات تجمع پروتئین HN را در دانههای رسیده گیاهان T1 تا T3 نشان داد و آزمون نواری ایمونوکروماتوگرافی نیمهکمّی نشان داد که عیار نسبی آنتیژن در دانهها در هر سه نسل ثابت و برابر ۱:۲۹ مانده است. نویسندگان تأکید میکنند که نتیجهگیری ثبات چندنسلی بر پروتئین دانه استوار است، نه رونوشت برگ، چون برگ بافت هدف برای پیشبر اختصاصی آندوسپرم نیست.
ارزیابی زراعی دوازده صفت اصلی مرتبط با رشد، عملکرد و کیفیت دانه، تفاوتی آشکار میان دو رده نشان داد. رده HN-1 با رقم وحشی TP309 بسیار قابلمقایسه بود: در نسل T2 هیچیک از دوازده صفت تفاوت معنیداری نداشت و در نسلهای T1 و T3 تنها بهترتیب طول خوشه و وزن مؤثر خوشه تفاوتهای کوچک اما معنیدار نشان دادند. در مقابل، رده HN-2 در نسلهای مختلف چند تفاوت فنوتیپی معنیدار داشت، از جمله نرخ بذربندی کمتر در T1، کاهش طول خوشه و وزن مؤثر خوشه در T2 و افزایش وزن مؤثر خوشه و وزن هزاردانه در T3.
شاخصهای ریختشناسی دانه مانند طول، عرض، ضخامت و درصد برنج قهوهای در هیچیک از دو رده تراریخته با رقم وحشی تفاوتی نداشت، اما گچیبودن دانه داستان دیگری داشت. در HN-1 نرخ و درجه گچیبودن در نسلها تغییر معنیداری نکرد، اما در HN-2 هر دو شاخص بهطور معنیدار و پیوسته افزایش یافت. میکروسکوپ الکترونی روبشی نشان داد دانههای نشاسته در بذرهای رقم وحشی و HN-1 منظم، چندوجهی و فشردهاند، در حالی که آندوسپرم گچی بذرهای HN-2 دانههای نامنظم، بزرگ و سستچیده داشت. نویسندگان این فنوتیپ گچیبودن مختص رده را به اثر موقعیت درج T-DNA و اختلال آن در ساختار نشاسته آندوسپرم HN-2 نسبت میدهند.
ویژگیهای تولیدمثلی و رشدی عمدتاً تحت تأثیر قرار نگرفتند. نرخ جوانهزنی بذر و سبزشدن نهال در همه ردهها و نسلها بیش از ۹۰ درصد بود و میان HN-1، HN-2 و رقم وحشی تفاوت معنیداری نداشت. کل چرخه رشد از کاشت تا رسیدن ۱۵۰ تا ۱۸۰ روز بود و تفاوتی مختص رده نداشت. زندهمانی گرده که با رنگآمیزی ید-یدید پتاسیم در ساعتهای صفر، سه و شش پس از جمعآوری بساک سنجیده شد، در هیچ نسلی میان گیاهان تراریخته و وحشی تفاوت معنیداری نشان نداد و نسبت گرده سالم و بارور در طول زمان ثابت ماند.
ارزیابی اولیه ایمنی محیطی نتایجی با اطمینان محتاطانه، اما با تبصرههای مهم، به دست داد. PCR روی برگ علفهای هرزی که کنار قطعات تراریخته رشد میکردند، هیچ تکثیری از ترانسژن HN نشان نداد؛ یعنی در شرایط محدود و تکزمانه مطالعه، جریان ژنی قابلتشخیصی دیده نشد. پایش بندپایان با تلههای چسبناک زرد که در مرحله شیری رشد دانه (زمانی که فشار حشرات معمولاً بیشترین است) نصب شده بودند، در همه قطعات بهطور معنیداری بیش از سایر راستهها پروانهها را صید کرد، اما غنای گونهای و فراوانی میان قطعات وحشی، HN-1 و HN-2 تفاوت معنیداری نداشت. نویسندگان تأکید میکنند که این بررسی یک ارزیابی مشاهدهای اولیه با دامنه نمونهبرداری محدود و مدت پایش کوتاه بود، در یک محل و یک فصل کشت در قطعات کوچک انجام شد و نمیتواند جایگزین آزمایشهای چندمحلی و چندساله مورد نیاز برای تأیید رسمی ایمنی زیستی فرآوردههای زیستی دامپزشکی تراریخته شود.
این مطالعه به چند محدودیت دیگر نیز اذعان دارد. ریزجانداران خاک و موجودات غیرهدف زیرزمینی ارزیابی نشدند و جریان ژنی سطح پایین و بلندمدت را نمیتوان بهطور کامل رد کرد. پایداری بیان آنتیژن در تنشهای شدید مزرعهای مانند خشکی و دمای بالا و همچنین پایداری بلندمدت آنتیژن در انبار با دما و رطوبت بالا هنوز آزمایش نشده است. ایمنیزایی خوراکی و کارایی محافظتی آنتیژن HN تولیدشده در رده HN-1 در مرغها همچنان نیازمند تأیید مستقل است و مزیت اقتصادی واکسنهای مبتنی بر برنج نسبت به سکوهای تولید سنتی منتظر تحلیل فنیاقتصادی کمّی است.
نویسندگان با وجود این محدودیتها نتیجه میگیرند که رده HN-1، با توارث پایدار ترانسژن، عملکرد زراعی و کیفیت دانه مشابه رقم وحشی و بدون خطر زیستمحیطی مشاهدهشده در شرایط مزرعه محصور، شایسته آن است که کاندیدای برتر بیوراکتور گیاهی برای تولید صنعتی آنتیژن HN واکسن ویروس نیوکاسل باشد، و یافتههایشان دادههای ژنتیکی، زراعی و ایمنی زیستی اولیه را برای ادامه توسعه و ارزیابی نظارتی واکسنهای دامپزشکی نیوکاسل مشتق از برنج فراهم میکند.